Koos Dirkse
Samenvatting
Kanker wordt vaak beschreven als een opeenstapeling van genetische veranderingen die uiteindelijk uitmondt in ongecontroleerde celgroei. Voor de vroegste fase van borstkanker is dat beeld waarschijnlijk te eenvoudig. Recent onderzoek liet zien dat in histologisch normaal borstweefsel van gezonde vrouwen zeldzame aneuploïde epitheelcellen voorkomen, en dat het merendeel daarvan klonaal is uitgebreid [1]. Genetische afwijking, klonale expansie en kanker zijn dus niet hetzelfde.
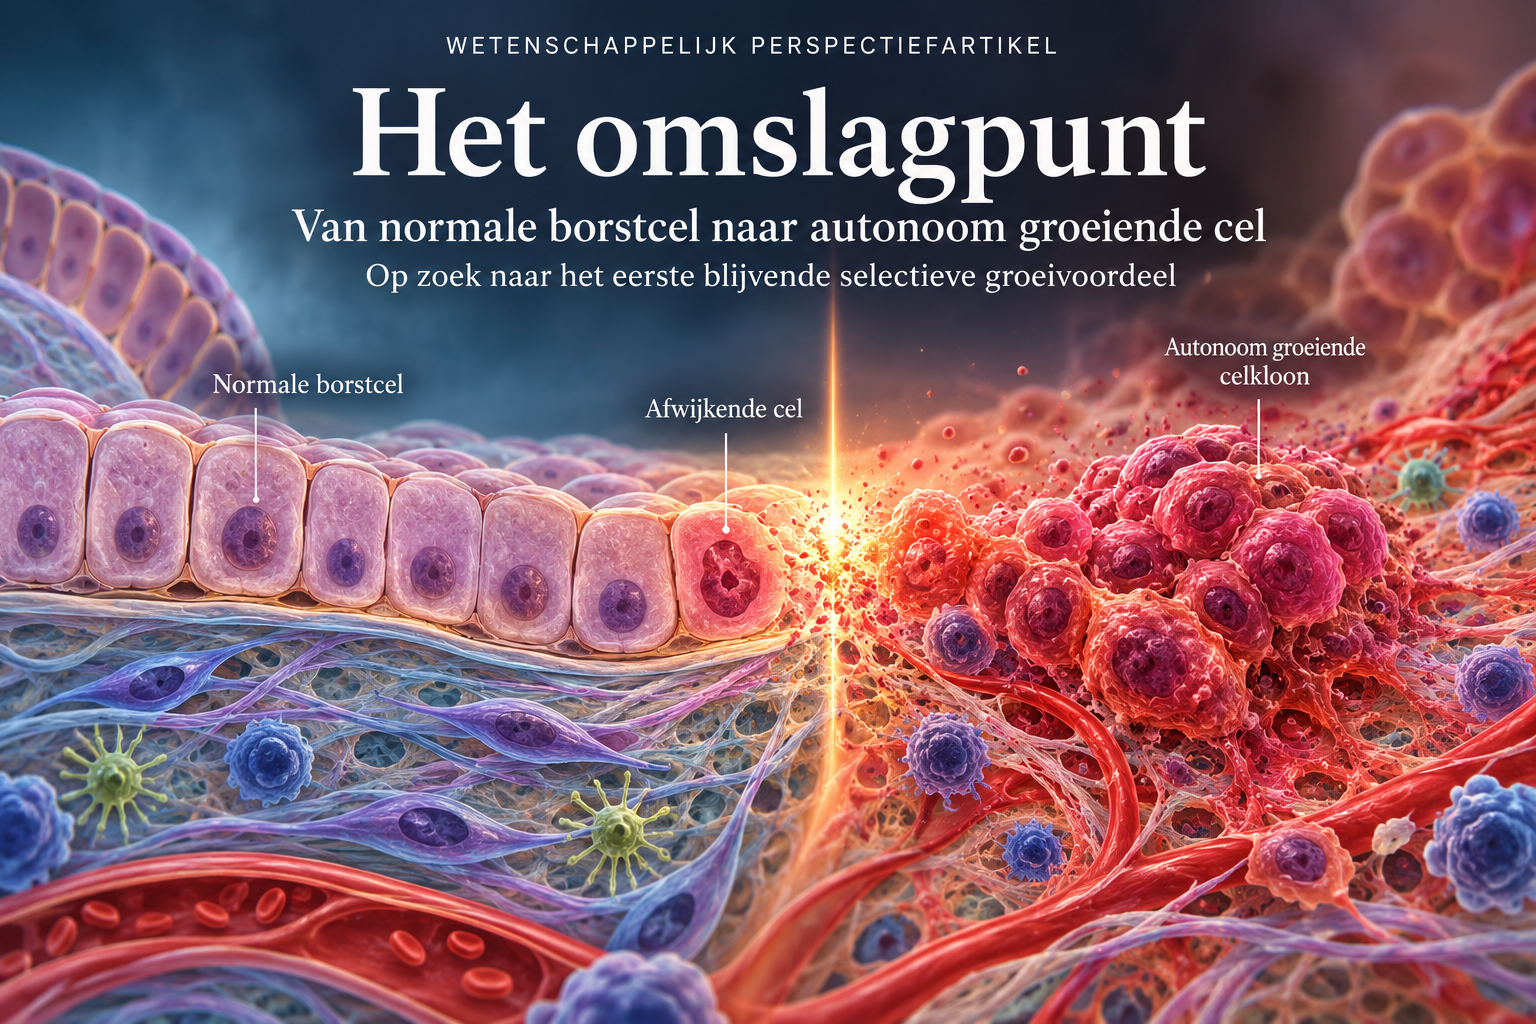
Dit artikel stelt daarom de vraag: wat verandert er op het moment dat een afwijkende borstcel voor het eerst een blijvend selectief voordeel krijgt ten opzichte van haar normale omgeving? Op basis van inzichten uit de somatische evolutie, de celbiologie en de biologie van de weefselmicro-omgeving wordt betoogd dat dit eerste blijvende voordeel waarschijnlijk niet door een genetische verandering alleen wordt bepaald, maar ontstaat uit de wisselwerking tussen een intrinsiek veranderd celprogramma en een lokale weefselomgeving waarin de normale remmende mechanismen tekortschieten.
Twee causale richtingen worden onderscheiden: de afwijkende cel verandert haar omgeving (model A), of een veranderde omgeving selecteert een reeds aanwezige afwijkende kloon (model B). Het beschikbare bewijs laat geen definitieve keuze toe, en er is evenmin aangetoond dat er één universeel omslagpunt voor alle vormen van borstkanker bestaat. Het artikel presenteert dan ook geen bewezen mechanisme, maar een werkdefinitie, een toetsbare hypothese en een onderzoeksprogramma. Dat kan op termijn van belang zijn voor vroegdetectie en preventie.
Kernhypothese
Het eerste blijvende selectieve groeivoordeel van een afwijkende borstcel ontstaat mogelijk niet door de genetische afwijking alleen, maar op het moment waarop een intrinsiek veranderd celprogramma en een veranderde lokale weefselomgeving elkaar zodanig versterken dat de afwijkende kloon haar normale buren duurzaam begint te overtreffen.
Trefwoorden: borstkanker, somatische evolutie, klonale selectie, micro-omgeving, myo-epitheel, extracellulaire matrix, vroegdetectie
1. Inleiding
Wie de literatuur over borstkanker bestudeert, komt al snel uit bij de vraag hoe een bestaande tumor groeit, uitzaait en reageert op behandeling. Dit artikel richt zich op een veel eerder moment: wat gebeurt er met een borstcel voordat er sprake is van een klinisch herkenbare tumor?
Die vraag lijkt eenvoudig te beantwoorden. Een normale cel krijgt een genetische afwijking, gaat zich anders gedragen en groeit uiteindelijk uit tot een tumor. De moderne kankerbiologie laat echter zien dat dit lineaire beeld niet klopt. Genetisch afwijkende cellen komen voor in weefsels die onder de microscoop volkomen normaal lijken, en sommige daarvan dragen veranderingen in genen die ook in tumoren worden gevonden [2, 3]. Toch leidt hun aanwezigheid niet automatisch tot kanker.
Voor de borst is dit beeld recent sterk aangescherpt. Met single-cell-DNA-sequencing werden ruim 83.000 epitheelcellen uit normaal borstweefsel van 49 gezonde vrouwen onderzocht. Bij álle vrouwen werden zeldzame aneuploïde cellen gevonden, met een mediaan van ongeveer 3 procent van de epitheelcellen; hun aantal nam toe met de leeftijd. Ruim 80 procent van deze cellen maakte deel uit van een klonale expansie, en de chromosomale veranderingen (onder meer winst van 1q en verlies van 10q, 16q en 22q) leken op die van invasieve borstkanker. Het omliggende weefsel was histologisch normaal [1].
Daarmee ontstaat een fundamenteel probleem. Als een genetische of chromosomale afwijking op zichzelf niet voldoende is om kanker te veroorzaken, wat maakt dan het verschil tussen een afwijkende cel die beperkt blijft en een afwijkende cel die zich blijvend begint uit te breiden? Die vraag is het uitgangspunt van dit artikel.
2. Een mutatie is nog geen kanker
Kanker is in belangrijke mate een evolutionair proces. Cellen verzamelen gedurende het leven genetische veranderingen. Veel daarvan hebben weinig of geen functionele gevolgen; andere beïnvloeden eigenschappen die van belang zijn voor overleving, celdeling, differentiatie of de interactie met de omgeving. Geeft een verandering een cel onder bepaalde omstandigheden een voordeel, dan kan die cel zich ten koste van haar buren uitbreiden en ontstaat een kloon.
Het klassieke model van carcinogenese begint bij zo’n mutatie die een groeivoordeel oplevert [4]. Dat model is de afgelopen tien jaar ingrijpend verfijnd. In normale huid, slokdarm en vele andere weefsels zijn driver-mutaties en klonale expansies aangetoond in een omvang die vroeger ondenkbaar werd geacht [2, 5]. Zeer diepe sequencing van normaal weefsel uit zestien organen liet bovendien zien dat de selectie van zulke mutaties weefselspecifiek is en wordt gevormd door blootstellingen zoals alcohol, roken en kankerbehandeling [6]. Welke factoren bepalen waarom de ene kloon uitbreidt en de andere niet, is echter grotendeels onopgehelderd [3].
Genetische veranderingen blijven onmisbaar: langdurige autonome groei zonder veranderingen in het genetische of epigenetische programma van een cel is nauwelijks voorstelbaar. Het genoom kan worden gezien als de motor van het veranderde celprogramma. Maar het verschijnen van een driver-mutatie hoeft niet samen te vallen met het moment waarop de tumorontwikkeling werkelijk begint. Of de motor een duurzaam voordeel oplevert, kan mede van de omgeving afhangen.
Een afwijkende cel is nog geen tumor. Een mutatie is nog geen autonome groei. En een kloon is nog geen kanker.
3. Wat is een blijvend selectief voordeel?
Het begrip selectief voordeel komt uit de evolutiebiologie: binnen een populatie hebben sommige varianten onder bepaalde omstandigheden een grotere kans om te overleven en zich voort te planten dan andere. Voor cellen betekent dit niet simpelweg dat een cel sneller deelt. Een cel kan ook een voordeel hebben doordat zij beter bestand is tegen celdood, minder gevoelig is voor groeiremmende signalen, voedingsstoffen beter benut, zuurstoftekort beter verdraagt of minder effectief door het immuunsysteem wordt opgeruimd.
Het relevante begrip is daarom relatieve fitness: niet hoe snel een afwijkende cel groeit, maar hoe haar gedrag zich verhoudt tot dat van de normale cellen om haar heen. Een cel die iets sneller deelt maar voortdurend door haar omgeving wordt afgeremd, heeft geen blijvend voordeel. Het omslagpunt ontstaat mogelijk pas wanneer die balans duurzaam verschuift en de afwijkende cel haar buren niet alleen overleeft, maar daadwerkelijk overtreft in groei, overleving of ruimtelijke uitbreiding. Daarom spreekt dit artikel van het eerste blijvende selectieve groeivoordeel.
4. De cel in haar weefselomgeving
Een borstcel bevindt zich niet in een biologisch vacuüm. Zij maakt deel uit van een weefsel waarin voortdurend signalen worden uitgewisseld tussen luminale epitheelcellen, myo-epitheel, fibroblasten, immuuncellen, extracellulaire matrix en bloedvaten. Groeifactoren, hormonen, cytokinen en mechanische krachten vertellen een normale cel wanneer zij moet delen, wanneer zij moet stoppen en hoe zij zich ruimtelijk moet organiseren. Veranderen die signalen, dan kan ook het gedrag van de cel veranderen.
Hieruit volgt een belangrijk uitgangspunt: het biologische effect van een genetische afwijking kan mede afhangen van de omgeving waarin de afwijkende cel zich bevindt. Dezelfde mutatie hoeft niet onder alle omstandigheden hetzelfde effect te hebben. Cel en omgeving moeten als één systeem worden bekeken. Hieronder worden vijf componenten van dat systeem besproken.
4.1 Het myo-epitheel als mogelijke rem
Het myo-epitheel vormt de buitenste cellaag rond de luminale epitheelcellen van de borstklierbuisjes. Deze laag is meer dan een fysieke barrière: myo-epitheliale cellen geven ook signalen af die het gedrag van omliggende cellen beïnvloeden. Bij de progressie van goedaardige afwijkingen en ductaal carcinoma in situ (DCIS) naar invasieve borstkanker zijn verlies van normale myo-epitheliale functies, activatie van fibroblasten en verhoogde proteaseactiviteit beschreven [7]. Experimenteel onderzoek liet zien dat normale myo-epitheliale cellen de overgang van in-situ- naar invasieve groei kunnen onderdrukken [8].
Dat maakt het myo-epitheel interessant als component van de lokale groeiregulatie. Het bewijs betreft echter vooral latere stadia en toont niet aan dat verandering van het myo-epitheel het universele eerste moment van borstkanker is. Binnen de hier voorgestelde hypothese is het daarom geen bewezen oorzaak, maar een mogelijke schakel in het wegvallen van lokale groeiremming.
4.2 De fysieke omgeving: matrix en mechanica
De extracellulaire matrix is geen passief steunweefsel. Cellen nemen de mechanische eigenschappen van hun omgeving waar en vertalen die naar intracellulaire signalen. Matrixstijfheid, celadhesie en krachten op het cytoskelet beïnvloeden zo het celgedrag; in modellen van de borst bevorderen een stijvere, sterker vernette matrix en verhoogde mechanische spanning een kwaadaardig fenotype [9, 10]. Klinisch relevant is dat een hoge mammografische borstdichtheid, die mede de hoeveelheid bindweefsel en matrix weerspiegelt, één van de sterkste bekende risicofactoren voor borstkanker is [11].
De vraag voor het vroegste stadium is of een lokale verandering in de fysieke omgeving van normaal borstweefsel ertoe kan bijdragen dat een reeds aanwezige afwijkende kloon een groeivoordeel krijgt. Dat is biologisch plausibel, maar mag niet worden verward met bewezen causaliteit. Dat matrixeigenschappen celgedrag beïnvloeden, is goed onderbouwd; dat een specifieke verandering in matrixstijfheid het eerste blijvende voordeel van een borstcel veroorzaakt, is niet vastgesteld.
4.3 Het immuunsysteem als selectiefilter
Afwijkende cellen kunnen door het immuunsysteem worden herkend en verwijderd. Bij de hierboven genoemde aneuploïde cellen in gezond borstweefsel wordt verondersteld dat effectieve immuunsurveillance hen in toom houdt, zodat zij als voorlopers ‘bevroren’ blijven voordat zij aan het immuunsysteem ontsnappen [12]. Tegelijkertijd kan lokale ontsteking een omgeving scheppen waarin bepaalde cellen juist gemakkelijker overleven, en de eigenschappen van fibroblasten en matrix veranderen. Het immuunsysteem kan dus zowel rem als selectiefactor zijn. Ook dit wijst erop dat het omslagpunt niet het gevolg hoeft te zijn van één gebeurtenis, maar van een opeenstapeling van kleine veranderingen die samen de balans verschuiven.
4.4 Zuurstof en metabolisme
De beschikbaarheid van zuurstof en voedingsstoffen beïnvloedt eveneens welke cellen overleven. Hypoxiegerelateerde signaalroutes sturen energiegebruik, overleving en groeigedrag; een cel die beter met zuurstoftekort omgaat, kan daardoor een voordeel krijgen. Ook hier geldt dat hypoxie niet zonder meer als eerste oorzaak kan worden aangewezen. Waarschijnlijker zijn metabole omstandigheden één van de filters waardoor bepaalde cellen beter overleven dan andere: een veranderd celprogramma krijgt pas een blijvend voordeel wanneer de lokale omstandigheden dat mogelijk maken.
4.5 De borst als dynamisch orgaan
De borst is geen statisch weefsel. Hormonale cycli, zwangerschap, lactatie, involutie en veroudering veranderen voortdurend de structuur en samenstelling ervan. Een omgeving die op het ene moment bepaalde groeisignalen ondersteunt, kan later geheel anders zijn. Een kloon die tijdens een tijdelijke fysiologische verandering uitbreidt, hoeft daarom niet hetzelfde traject te volgen als een kloon die jarenlang blijft groeien. Dit roept een kernvraag op: hoe onderscheid je een normale, tijdelijke klonale expansie van een expansie die deel wordt van een premaligne ontwikkeling? Daarvoor is niet alleen informatie over de genetische afwijking nodig, maar ook over de duur, omvang en context van de expansie.
5. Twee mogelijke causale modellen
Een van de belangrijkste vragen is welke verandering het eerst komt. Er zijn ten minste twee modellen denkbaar.
Model A – De cel verandert haar omgeving
Een genetisch afwijkende cel ontwikkelt ander biologisch gedrag en geeft bijvoorbeeld signalen af die stromale cellen, matrix of immuuncellen beïnvloeden. De veranderde omgeving versterkt vervolgens het oorspronkelijke voordeel. De keten begint bij de cel.
Model B – De omgeving selecteert een bestaande kloon
Een afwijkende cel of kleine kloon is al aanwezig, maar heeft aanvankelijk nauwelijks voordeel. Door veranderingen in bijvoorbeeld matrix, fibroblasten, hormonen, ontsteking of immuunactiviteit wordt de omgeving minder remmend, waardoor de bestaande kloon alsnog een voordeel krijgt. De keten begint bij de omgeving.
Beide modellen zijn biologisch voorstelbaar. Het huidige bewijs laat niet toe te stellen dat één model altijd geldt, en het is goed mogelijk dat beide in verschillende situaties optreden of elkaar in de loop van de tijd afwisselen.
Verhouding tot bestaande theorieën
Het idee dat de omgeving mede bepaalt welke klonen worden geselecteerd, is niet nieuw, en een wetenschappelijk perspectief moet zich daartoe verhouden. Model B sluit nauw aan bij de theorie van adaptieve oncogenese, die stelt dat een jong, gezond weefsel de fitness van normale stamcellen optimaliseert en zo afwijkende klonen onderdrukt, terwijl veroudering en andere schade aan het weefsel dat evenwicht verstoren en oncogene mutaties juist adaptief maken [13]. Het begrip veldcancerisatie beschrijft al sinds de jaren vijftig hoe grotere gebieden van ogenschijnlijk normaal weefsel vatbaar kunnen zijn voor kwaadaardige ontaarding [14]. En de tissue organization field theory gaat nog verder door kanker primair als een stoornis van de weefselorganisatie op te vatten [15].
De bijdrage van dit artikel ligt niet in het claimen van een geheel nieuw principe, maar in het toespitsen van deze inzichten op één concrete, meetbare overgang in de borst: het moment waarop een afwijkende kloon voor het eerst duurzaam sterker wordt dan haar buren, en de vraag hoe dat moment empirisch kan worden vastgesteld.
6. Het omslagpunt meetbaar maken
Tot nu toe is het ‘omslagpunt’ vooral een concept. Om het wetenschappelijk te kunnen onderzoeken, moet het meetbaar worden gemaakt. Een mogelijke werkdefinitie luidt:
Werkdefinitie
Het omslagpunt is het moment waarop een genetisch of epigenetisch afwijkende celkloon aantoonbaar een duurzaam relatief voordeel verkrijgt in proliferatie, overleving of ruimtelijke uitbreiding ten opzichte van haar normale buren, in samenhang met meetbare veranderingen in de lokale weefselomgeving.
De definitie bevat bewust vier elementen: (1) een afwijkende cel of kloon, (2) een relatief voordeel, (3) dat duurzaam is, (4) bezien in samenhang met de omgeving. Het omslagpunt is daarmee niet noodzakelijk één moleculaire gebeurtenis, maar mogelijk de overgang van een relatief stabiele toestand naar een zichzelf versterkende toestand.
6.1 Eén biomarker zal niet volstaan
Als het omslagpunt het resultaat is van een wisselwerking tussen cel en omgeving, ligt het niet voor de hand dat één biomarker het kan voorspellen. Een mutatie zegt iets over de cel, de toestand van de matrix iets over de fysieke omgeving, het myo-epitheel iets over de weefselorganisatie, een immuunprofiel iets over de lokale afweer en een epigenetisch profiel iets over de stabiliteit van het veranderde celprogramma. Geen van deze metingen hoeft afzonderlijk voldoende te zijn; de meest betekenisvolle informatie ontstaat mogelijk uit de combinatie, in de vorm van een ruimtelijk en biologisch risicoprofiel. Een dergelijke gecombineerde voorspeller is echter nog niet klinisch gevalideerd.
6.2 De ruimtelijke dimensie
Hoe groot is de relevante omgeving? Het kan gaan om enkele tientallen omliggende cellen, maar ook om een groter deel van een terminale ductulolobulaire eenheid (TDLU), de functionele eenheid van de borstklier waarin de meeste borstkankers ontstaan. Wie een afwijkende cel vindt, moet daarom ook weten wat zich direct om die cel heen bevindt: welke fibroblasten er liggen, hoe de matrix eruitziet, of het myo-epitheel intact is, welke immuuncellen aanwezig zijn en welke signalen de omliggende cellen afgeven, en of die omgeving verandert naarmate de kloon groeit. Technieken als single-cell-sequencing en ruimtelijke transcriptomics maken zulke vragen steeds beter onderzoekbaar.
6.3 De tijdsdimensie
De grootste uitdaging is waarschijnlijk de tijd. Een biopt is een momentopname: het toont wat er op dat moment aanwezig is, niet wat er jaren eerder was. Daardoor zijn oorzaak en gevolg moeilijk te scheiden. Wordt rond een afwijkende kloon een veranderde matrix aangetroffen, dan kan de matrix de kloon hebben bevoordeeld, maar kan de groeiende kloon de matrix ook zelf hebben veranderd. Zonder longitudinale gegevens blijven beide verklaringen open. Het werkelijk vaststellen van het omslagpunt vereist dus onderzoek waarin dezelfde of vergelijkbare klonen gedurende langere tijd worden gevolgd. Dat is technisch en klinisch lastig, maar wetenschappelijk van groot belang.
7. Een mogelijk onderzoeksprogramma
Een toekomstig onderzoeksprogramma zou vier informatielagen kunnen combineren:
- Inventarisatie. Het in kaart brengen van genetische en chromosomale afwijkingen in normaal borstweefsel van vrouwen van verschillende leeftijden: niet alleen welke afwijkingen aanwezig zijn, maar ook hoe groot de klonen zijn en waar zij in het weefsel liggen.
- Omgeving. Het karakteriseren van de directe omgeving van deze klonen: myo-epitheel, fibroblasten, extracellulaire matrix, immuuncellen en metabole omstandigheden.
- Tijd. Het toevoegen van de tijdsdimensie, zodat zichtbaar wordt welke veranderingen voorafgaan aan klonale expansie en welke erop volgen.
- Experiment. Gecontroleerde driedimensionale cel- en organoïdmodellen waarin genetisch verschillende epitheelcellen worden blootgesteld aan wisselende matrixstijfheid, fibroblastactiviteit, hormonale signalering, immuunactiviteit en hypoxie, om vast te stellen welke combinatie een meetbaar voordeel oplevert.
7.1 Een experiment om de modellen te onderscheiden
Bijzonder informatief zou een experiment zijn dat rechtstreeks vraagt wat er eerst komt. Een genetisch afwijkende cel wordt daarbij gevolgd in een omgeving die zo normaal mogelijk is, en daarnaast in een omgeving waarin één of meer factoren gericht zijn veranderd. Breidt de cel vooral in de veranderde omgeving sterk uit, dan ondersteunt dat model B. Veroorzaakt de cel daarentegen zelf veranderingen in haar omgeving die vervolgens haar eigen groei versterken, dan krijgt model A meer steun. Zulke experimenten vormen de stap van correlatie naar causaliteit.
7.2 Kan het omslagpunt worden teruggedraaid?
Een interessante vervolgvraag is of het proces na het ontstaan van een selectief voordeel nog te beïnvloeden is. Als een kloon mede groeit doordat lokale remmende signalen zijn weggevallen, kan worden onderzocht of herstel van die signalen het voordeel vermindert. Dat betekent niet dat er nu een behandeling bestaat waarmee een dergelijk vroeg omslagpunt kan worden teruggedraaid. Bestaande preventieve en therapeutische kennis laat zien dat bepaalde biologische processen beïnvloedbaar zijn, maar dat is iets anders dan het gericht terugdraaien van het hier voorgestelde mechanisme. Ook hier moet onderscheid worden gemaakt tussen biologische mogelijkheid en klinisch bewezen toepassing.
8. Wat staat vast en wat is nog hypothese?
Een verantwoord perspectief maakt onderscheid tussen verschillende niveaus van zekerheid. De onderstaande tabel vat die samen.
| Bewering | Stand van het bewijs |
|---|---|
| Somatische mutaties ontstaan gedurende het leven in normale cellen. | Vastgesteld |
| Genetisch afwijkende, soms klonaal uitgebreide cellen komen voor in normaal ogend (borst)weefsel. | Goed gedocumenteerd |
| Klonale selectie is een kernonderdeel van somatische evolutie. | Goed onderbouwd |
| De micro-omgeving beïnvloedt het gedrag van epitheelcellen. | Uitgebreid onderzocht |
| Myo-epitheel, fibroblasten, matrix, immuuncellen, hormonen en metabolisme hebben elk biologische invloed. | Ondersteund door meerdere onderzoekslijnen |
| De wisselwerking tussen een afwijkend celprogramma en een veranderde omgeving veroorzaakt het eerste blijvende voordeel van een borstcel. | Hypothese – niet bewezen |
| Er bestaat één universeel omslagpunt voor alle vormen van borstkanker. | Niet aangetoond |
Voor de cruciale stap – de veronderstelde causale wisselwerking – ontbreekt vooralsnog voldoende longitudinaal en borstspecifiek bewijs.
9. Een andere vraag stellen
De klassieke vraag luidt: welke mutatie veroorzaakt de tumor? De benadering in dit artikel stelt een andere vraag: waarom krijgt deze specifieke celkloon, op deze plaats en onder deze omstandigheden, een blijvend voordeel? Als een mutatie jarenlang aanwezig kan zijn zonder dat er een tumor ontstaat, zegt het vinden van die mutatie alleen mogelijk weinig over het werkelijke risico. Het biologisch relevante moment kan later liggen: wanneer de kloon begint uit te breiden, haar omgeving beïnvloedt of niet langer door haar buren wordt afgeremd.
Voor de diagnostiek zou dit een verschuiving betekenen. Traditionele diagnostiek richt zich op het aantonen van afwijkingen die er al zijn. Een toekomstige benadering zou meer aandacht kunnen geven aan het gedrag van een afwijkende cel in haar omgeving. Een kloon die al vele jaren stabiel aanwezig is, betekent biologisch mogelijk iets anders dan een vergelijkbare kloon die snel groter wordt en tegelijk veranderingen in haar omgeving vertoont. Dat onderscheid kan van belang worden voor risicostratificatie. De vragen zijn dan niet alleen: is deze cel afwijkend? Maar ook: breidt deze kloon zich uit? En verandert haar omgeving op een manier die die uitbreiding ondersteunt?
De centrale onderzoeksvraag
Wat is het eerste blijvende biologische verschil waardoor een afwijkende borstcelkloon haar normale buren begint te overtreffen – en kunnen we dat verschil herkennen voordat er een klinisch herkenbare tumor is?
Als het antwoord op die vraag uiteindelijk ja blijkt te zijn, ontstaat een nieuw onderzoeksgebied tussen de normale borst en de klinisch herkenbare kanker. Niet de tumor staat dan centraal, maar de overgang ernaartoe; niet alleen de mutatie, maar de selectie; niet alleen de cel, maar de relatie tussen cel en omgeving.
10. Conclusie
De ontwikkeling van borstkanker kan niet volledig worden begrepen door uitsluitend te kijken naar de genetische veranderingen in tumorcellen. Genetische afwijkingen zijn essentieel voor de evolutie van kanker, maar hun aanwezigheid betekent niet automatisch dat er een tumor ontstaat. Afwijkende cellen en klonen kunnen lange tijd in normaal ogend weefsel aanwezig zijn zonder een dominante positie in te nemen.
Dit artikel stelt dat het eerste blijvende selectieve groeivoordeel van een afwijkende borstcel mogelijk ontstaat uit de wisselwerking tussen de cel en haar lokale weefselomgeving: de cel beschikt over een veranderd genetisch of epigenetisch programma, de omgeving bepaalt in hoeverre dat programma werkelijk een voordeel oplevert. Welke van beide als eerste verandert, is niet vastgesteld, en mogelijk leiden meerdere biologische routes naar hetzelfde eindpunt.
Juist daarom is longitudinaal onderzoek nodig, waarin dezelfde celkloon samen met haar directe omgeving gedurende langere tijd wordt gevolgd. Alleen zo kan worden vastgesteld welke veranderingen aan expansie voorafgaan, welke er het gevolg van zijn, en welke combinatie van factoren het moment markeert waarop een afwijkende cel voor het eerst duurzaam sterker wordt dan haar normale buren. De betekenis van deze benadering ligt niet in een nieuw bewezen mechanisme, maar in een toetsbare onderzoeksvraag. Dat moment herkennen voordat er een tumor ontstaat – dat is mogelijk het werkelijke omslagpunt.
Verantwoording
Dit artikel is een perspectief- en hypotheseartikel. Het berust op een brede bestudering van de wetenschappelijke literatuur over de vroegste stadia van borstkanker, somatische mutaties, klonale expansie en de interactie tussen cellen en hun micro-omgeving. De auteur heeft voor dit artikel geen experimentele gegevens verzameld en presenteert geen eigen laboratoriumresultaten. De centrale hypothese is een synthese van bestaande inzichten; de auteur claimt niet dat het voorgestelde mechanisme bewezen is.
Bij de voorbereiding zijn meerdere generatieve AI-systemen gebruikt als hulpmiddel bij het ordenen van wetenschappelijke inzichten, het vergelijken van verklaringsmodellen en het formuleren van aanvullende onderzoeksvragen. Deze systemen zijn niet als wetenschappelijke bron beschouwd en hun antwoorden zijn niet als bewijs gebruikt; alle inhoudelijke beweringen zijn herleid tot de onderstaande literatuur.
Literatuur
- Lin Y, Wang J, Wang K, et al. Normal breast tissues harbour rare populations of aneuploid epithelial cells. Nature. 2024;636(8043):663–670. doi:10.1038/s41586-024-08129-x
- Martincorena I, Roshan A, Gerstung M, et al. High burden and pervasive positive selection of somatic mutations in normal human skin. Science. 2015;348(6237):880–886. doi:10.1126/science.aaa6806
- Yoshida K. Somatic mutations and clonal evolution in normal tissues and cancer development. Experimental & Molecular Medicine. 2026;58:961–969. doi:10.1038/s12276-025-01592-0
- Hanahan D. Hallmarks of cancer: new dimensions. Cancer Discovery. 2022;12(1):31–46. doi:10.1158/2159-8290.CD-21-1059
- Fan J. Revisiting the somatic mutation theory of cancer pathogenesis. Nature Reviews Genetics. 2026;27:116. doi:10.1038/s41576-025-00905-3
- Pich O, Ward S, Rowan A, et al. Somatic evolution following cancer treatment in normal tissue. Nature. 2026;653:900–910. doi:10.1038/s41586-025-09792-4
- Cichon MA, Degnim AC, Visscher DW, Radisky DC. Microenvironmental influences that drive progression from benign breast disease to invasive breast cancer. Journal of Mammary Gland Biology and Neoplasia. 2010;15(4):389–397. doi:10.1007/s10911-010-9195-8
- Hu M, Yao J, Carroll DK, et al. Regulation of in situ to invasive breast carcinoma transition. Cancer Cell. 2008;13(5):394–406. doi:10.1016/j.ccr.2008.03.007
- Paszek MJ, Zahir N, Johnson KR, et al. Tensional homeostasis and the malignant phenotype. Cancer Cell. 2005;8(3):241–254. doi:10.1016/j.ccr.2005.08.010
- Levental KR, Yu H, Kass L, et al. Matrix crosslinking forces tumor progression by enhancing integrin signaling. Cell. 2009;139(5):891–906. doi:10.1016/j.cell.2009.10.027
- Boyd NF, Guo H, Martin LJ, et al. Mammographic density and the risk and detection of breast cancer. New England Journal of Medicine. 2007;356(3):227–236. doi:10.1056/NEJMoa062790
- Galluzzi L, Manic G, Vitale I. Effective immunosurveillance of clonally expanded mammary aneuploid cells. Cellular & Molecular Immunology. 2025;22(2):131–133. doi:10.1038/s41423-024-01250-x
- Laconi E, Marongiu F, DeGregori J. Cancer as a disease of old age: changing mutational and microenvironmental landscapes. British Journal of Cancer. 2020;122(7):943–952. doi:10.1038/s41416-019-0721-1
- Slaughter DP, Southwick HW, Smejkal W. ‘Field cancerization’ in oral stratified squamous epithelium: clinical implications of multicentric origin. Cancer. 1953;6(5):963–968.
- Sonnenschein C, Soto AM. Theories of carcinogenesis: an emerging perspective. Seminars in Cancer Biology. 2008;18(5):372–377. doi:10.1016/j.semcancer.2008.03.012


